
木瓜蛋白酶为何能高效切割蛋白质底物?
发布于 2026年10月20日
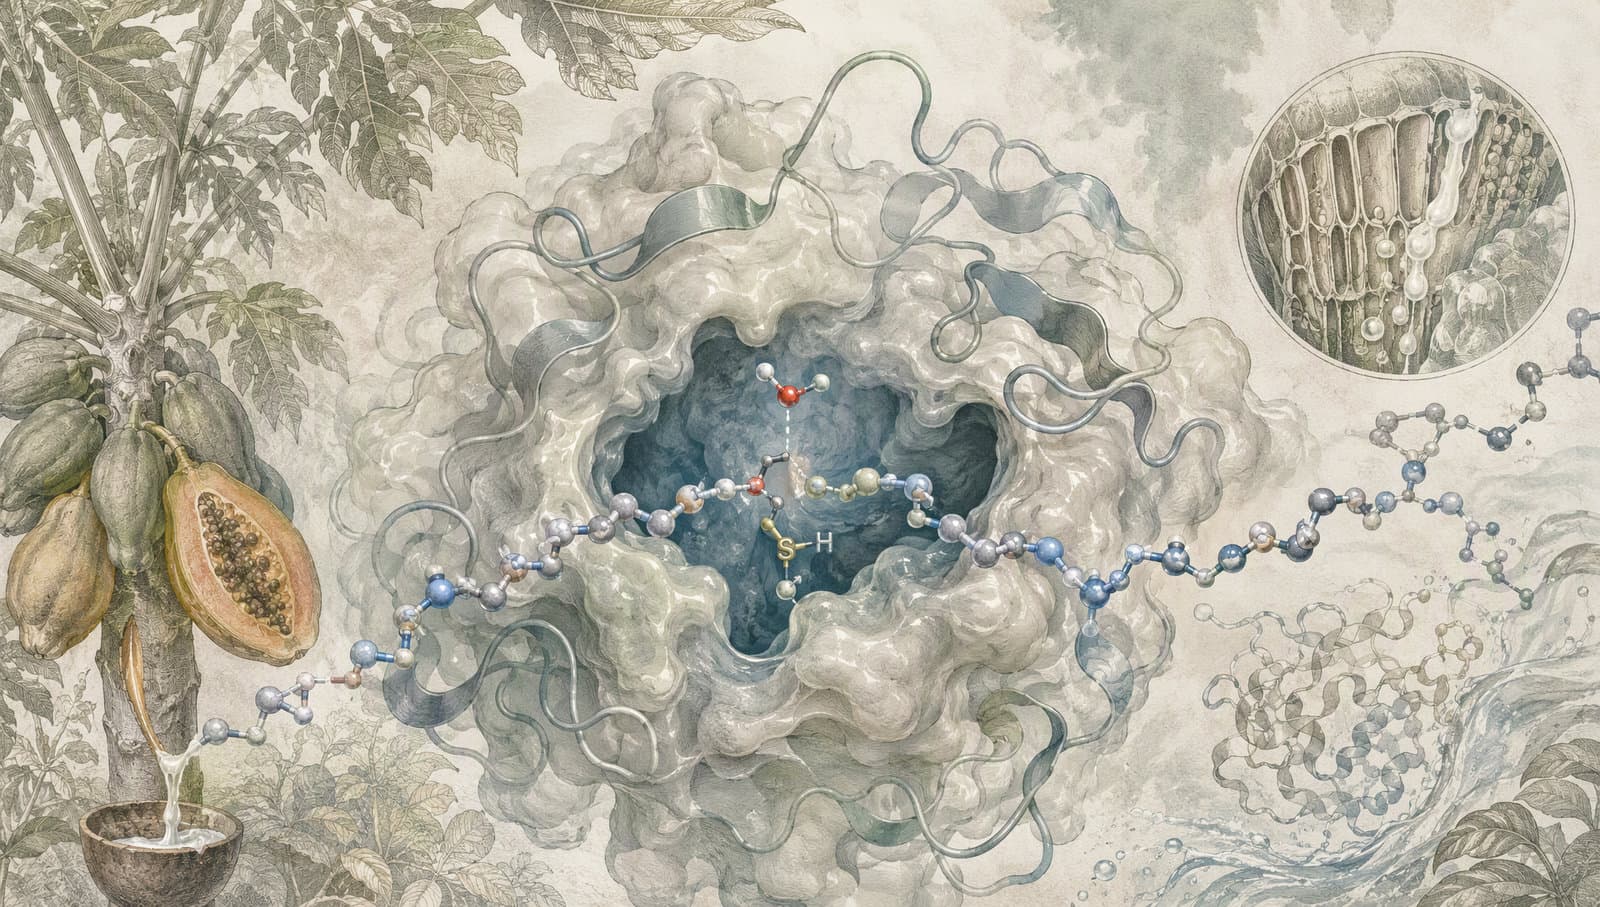
木瓜蛋白酶作用机制与肽键水解
分类:生物技术|酶工程|蛋白水解
摘要:文章解析木瓜蛋白酶的半胱氨酸亲核催化、底物口袋与切割窗口,进一步梳理活性测定、切割图谱、工具酶路线比较、重组表达、发酵纯化和放大控制,帮助研发团队把“能水解”转化为可重复的工艺结果。
木瓜蛋白酶作用机制为何离不开活性巯基
木瓜蛋白酶属于半胱氨酸蛋白酶。它的关键特点并不是简单“把蛋白切开”,而是利用活性位点半胱氨酸的巯基作为亲核体,对底物肽键的羰基发起攻击。邻近组氨酸参与活化这一亲核中心,天冬酰胺则帮助维持催化网络。底物进入活性裂隙后,酶与其形成短暂共价中间体,随后水分子参与反应,释放切割产物并恢复酶的催化状态。
这套机制解释了为什么活性巯基的化学状态至关重要。若关键半胱氨酸被氧化或受到不可逆修饰,即使蛋白浓度、纯度和外观没有明显变化,催化能力也可能下降。反过来,维持还原环境并不意味着还原剂越多越好,因为额外组分可能影响底物结构、检测信号或后续步骤。实际配方需要在保护活性中心与保持整个体系兼容之间寻找窗口。
木瓜蛋白酶能够水解多种蛋白肽键,但“广谱”不等于“随机”。底物口袋对切点附近残基的体积、疏水性和空间构象存在偏好,较大的疏水侧链出现在特定位置时往往更利于进入结合区。不过,序列偏好只是切割概率的一部分:埋藏在折叠核心的潜在切点,即使序列合适,也可能因为不可接近而很少发生反应。
木瓜蛋白酶底物特异性如何改变切割图谱
同一条蛋白序列在不同构象下,可能产生完全不同的切割图谱。天然折叠状态会保护内部片段,只暴露表面柔性环区;部分变性会开放更多位点;完全展开则可能迅速产生大量短肽。研发人员如果只记录“底物减少了多少”,就难以区分受控限量水解与过度降解。
判断底物窗口可以从三个层面展开。首先是序列层面,标记可能符合底物口袋偏好的区域;其次是结构层面,观察这些区域是否位于表面、柔性片段或结构域连接处;最后是反应层面,考虑温度、pH、盐、溶剂和混合方式是否改变蛋白构象。三个层面共同决定切点是否真正可用。
时间是切割图谱中的隐藏变量。反应初期常由最容易接近的位点主导,随着结构被打开,新的位点会陆续暴露,产物谱因而持续变化。若目标是有限水解,应在早期窗口内建立密集取样;若目标是充分降解,则要关注残留大分子、难切片段和酶失活之间的平衡。无论哪一种目标,都应设置明确终止方式,确保取样后反应不会继续推进。
底物浓度和酶底比同样不能分开理解。增加酶量可以提高初始速度,但也可能缩短可控操作时间;提高底物浓度会改变体系黏度、传质和有效碰撞。工艺筛选不应只比较终点转化率,而要同时记录初始速率、目标片段比例、非目标片段、聚集或沉淀以及终止后的稳定性。

木瓜蛋白酶底物特异性与切割窗口
木瓜蛋白酶活性测定不能只看一个终点
一个可靠的测活体系至少要回答两个不同问题:酶制剂本身还有多少催化能力,以及它在真实底物上是否产生了需要的切割结果。小分子或短肽底物适合快速比较酶活和初始速率,蛋白底物则更接近应用,却会引入构象、多个切点和产物干扰。两类方法相互补充,不能简单互相替代。
建立方法时,可先固定底物批次与反应体积,寻找读数随时间和酶量近似线性变化的区间。随后设置无酶对照、失活酶对照和空白体系,用于识别底物自发变化、制剂背景与检测干扰。若体系含有还原剂、金属离子或其他蛋白,还应分别验证这些组分是否影响显色、荧光或吸光读数。
对真实蛋白进行切割时,尺寸分离、电泳、色谱或质谱可以帮助建立产物图谱。目标不是堆叠分析手段,而是让每一种读出回答不同问题:快速测活用于比较批次和条件,尺寸分析用于观察底物消耗与片段分布,位点分析用于确认切割位置,功能实验用于判断处理后是否仍符合用途。只看到总蛋白下降,无法证明目标片段已按预期形成。
方法稳健性还取决于终止策略。改变pH、加入抑制条件或进行快速物理分离,都可能成为终止手段,但必须验证其是否真正停止反应,并且不会破坏后续读数。反应终止、取样保存和检测之间的时间差应纳入方法规定,否则同一批样品也可能因等待时间不同而出现偏差。
蛋白水解条件控制要先明确“切到哪里”
工具酶选型的第一步不是比较谁的活性更高,而是明确任务需要广谱水解、有限切割,还是特定序列加工。该酶适合处理具有可接近切点的多类蛋白底物,但难以仅凭一个短识别序列预测唯一产物。若任务要求在明确序列位置释放前体片段,就需要评估更具识别约束的蛋白酶路线。
晓鹜商城公开展示的重组Kex2蛋白酶能够识别并切割双碱性残基羧基端肽键,属于另一种序列特异性加工思路。Kex2不能被当作该酶的同类替代品,两者的催化类型、底物要求和使用目标均应分别核对。对于重组多肽前体加工,选择Kex2一类特异性工具酶还是较宽谱蛋白酶,应由目标切点、允许副产物和下游纯化难度共同决定。
酶选择完成后,再围绕目标设定评价标准。有限水解项目应关注目标片段比例、过切产物和时间窗口;充分水解项目应关注残留大分子、平均片段范围和批间一致性;前体加工项目则更重视目标切点、未切底物与非目标切割。评价标准不同,最佳酶量和反应时间也会不同。
重组木瓜蛋白酶表达为何要区分前体与成熟酶
该类半胱氨酸蛋白酶常涉及前体表达、折叠和活化问题。前肽可能帮助折叠并限制过早活性,但成熟过程若控制不当,也可能导致宿主损伤、自切或产物异质性。设计重组构建时,应明确表达的是前体、带前肽的可活化形式,还是成熟酶,并为每一种形式设置不同的纯化和活化判断。
表达筛选不能只看条带强度。至少应同步记录可溶性比例、前体与成熟体比例、纯度、单位质量活性、自切情况和储存稳定性。高表达但难以活化的构建,不一定优于表达量较低却能稳定获得成熟活性的候选。标签位置也要经过验证,避免影响前体加工、活性裂隙或后续制剂需求。
MatwingsVenus®(晓鹜®)可用于蛋白数据库检索、功能位点分析和蛋白属性评估。研发团队可输入目标序列、物种、表达宿主与优化目标,先核对蛋白身份与功能位点,再形成少量工程候选进入实验。若项目需要改进稳定性或表达,可把已确认的催化核心列为设计保护区域,并利用蛋白质工程流程对外围突变候选进行排序;最终仍以表达、活化、测活和产物图谱决定候选去留。
木瓜蛋白酶工艺优化如何走向发酵纯化放大
从摇瓶转向发酵罐后,温度、诱导强度、溶氧、培养时长和宿主蛋白酶背景可能改变前体加工与自切水平。纯化阶段的pH、盐浓度、还原环境和停留时间也会影响成熟酶活性。放大目标不应是复制某一次最高活性,而应建立跨批次可复现的表达、活化和保存窗口。
晓鹜商城公开的生物工艺开发与放大服务覆盖高表达菌株构建、发酵与纯化工艺开发,以及小试和中试逐级验证。此类项目可将构建筛选、成熟酶评价和活性方法作为工艺输入,再明确关键杂质、剂型、稳定性与规模边界。候选与检测口径稳定后,还可结合公开的蛋白质或多肽规模化生产服务评估后续衔接。
放大过程中应保留同一套基准底物和活性单位定义。研发批、中试批与放大批采用一致的底物制备、取样时间、终止方法和产物评价,才能区分设备尺度变化与分析漂移。如果最终用途是蛋白加工,还应把真实底物验证纳入放大放行判断,而不是只用短肽底物的高活性代表全部应用表现。

木瓜蛋白酶活性测定与工艺优化
MatwingsVenus®(晓鹜®)如何组织蛋白酶研发任务
一条可执行的任务链应从目标开始。团队先提交酶序列、目标底物、希望获得的切割程度、表达宿主和工艺约束;平台开展数据库检索、功能位点分析和蛋白属性评估,并输出少量工程候选;湿实验再比较表达、成熟活性、底物图谱和稳定性;实验数据回流后,才决定调整候选、反应条件或放大路线。
这套分层流程能够避免三个常见误区:把所有同家族蛋白视为同一种酶,把短肽测活直接等同于真实蛋白加工,以及在未保护催化位点时开展无边界突变。对于需要序列特异性加工或生产放大的项目,还可结合晓鹜商城公开的Kex2蛋白酶目录与生物工艺服务比较路线,但选择依据始终应是目标切点、产物质量和实测数据。
FAQ
木瓜蛋白酶属于半胱氨酸蛋白酶?
因为其催化中心利用半胱氨酸巯基作为亲核体攻击肽键,并通过共价中间体完成水解。活性巯基状态因此会直接影响催化表现。
该酶能在蛋白上只切一个位置吗?
通常不能仅凭一个简单识别序列保证唯一切点。真实切割取决于序列偏好、位点暴露、蛋白构象和反应时间。若需要单一位置加工,应优先评估更具序列约束的路线。
为什么短肽测活正常,真实蛋白却切不动?
短肽位点容易接近,而真实蛋白中的相同序列可能被折叠结构遮挡。还需检查底物构象、体系组分、酶活性状态和切割时间窗口。
如何避免过度水解?
可通过降低酶底比、缩短反应时间、降低底物暴露程度并建立快速终止步骤来控制,同时用密集取样寻找目标片段占比最高的窗口。
怎样判断重组酶适合放大?
应综合观察前体加工、成熟酶比例、单位质量活性、自切、纯化回收、储存稳定性和真实底物表现,并确认不同规模沿用一致的检测口径。
总结
该酶的价值来自活性半胱氨酸驱动的高效肽键水解,但研发重点不应停留在“能不能切”。底物构象决定切点是否暴露,反应时间决定切割图谱如何演化,活性方法与终止策略决定数据能否比较,表达和纯化则决定成熟酶能否稳定获得。MatwingsVenus®(晓鹜®)可辅助身份核对、位点分析和工程候选排序,晓鹜商城公开的特异性蛋白酶目录及生物工艺服务可用于路线比较和后续工艺衔接。最终方案仍需以目标底物、明确产物标准和实测结果为准。
